


Układ endokannabinoidowy ECS - Wprowadzenie i mechanizm 2026
Receptory CB1 i CB2, anandamid i 2-AG, enzymy FAAH oraz MAGL i sygnalizacja wsteczna. Co potwierdzają prace oryginalne, a co pozostaje hipotezą.
Anandamid, pierwszy endogenny ligand receptorów kannabinoidowych, został wyizolowany dopiero w 1992 roku przez zespół, w którym pracowali Devane i Hanus (Devane, Science, 1992). Nazwa całego układu wzięła się więc od rośliny, a nie od funkcji: badacze najpierw opisali receptor, do którego pasuje THC, a dopiero potem cząsteczkę wytwarzaną przez organizm. Ten przewodnik pokazuje, co o tym układzie mówią prace oryginalne. Gdzie siedzą receptory, czym różnią się dwa główne endokannabinoidy, jak enzymy wyłączają sygnał i na czym polega przekazywanie wsteczne w synapsie. Osobno wskazujemy twierdzenia o kannabidiolu i efekcie otoczenia, które w cytowanych źródłach nie mają takiego oparcia, jakie im się zwykle przypisuje.
KLUCZOWE INFORMACJE
• Ekspresja genu CB2 w tkankach odpornościowych jest 10-100 razy wyższa niż ekspresja CB1 (Galiegue, Eur J Biochem, 1995).
• MAGL odpowiada za około 85% aktywności rozkładającej 2-AG w mózgu myszy (Blankman, Chemistry and Biology, 2007).
• Kannabidiol zachowuje się wobec CB1 jak ujemny modulator allosteryczny w hodowlach komórkowych (Laprairie, BJP, 2015).
• Przegląd Ibeas Bih z 2015 roku uznaje działanie CBD przez sam ten układ za mało prawdopodobne (Neurotherapeutics, 2015).
• Synergia fitokannabinoidów z terpenami pozostaje u Russa hipotezą wymagającą dowodu (BJP, 2011).
Z czego zbudowany jest układ endokannabinoidowy?
Ten układ ma trzy warstwy: receptory, endogenne ligandy lipidowe oraz enzymy, które te ligandy wytwarzają i rozkładają. Mackie opisuje go dokładnie w takim składzie w przeglądzie z 2008 roku i zaznacza, że wiele efektów kannabinoidów przechodzi przez dwa receptory sprzężone z białkiem G, CB1 oraz CB2, choć w grę mogą wchodzić także inne białka (Mackie, Journal of Neuroendocrinology, 2008). Oba receptory sprzęgają się przede wszystkim z hamującymi białkami G i podlegają tym samym prawidłowościom farmakologicznym co pozostałe receptory tej rodziny. Mackie wymienia trzy z nich jako istotne dla odpowiedzi komórki na konkretny ligand: agonizm częściowy, selektywność czynnościową oraz agonizm odwrotny. To wyjaśnia, dlaczego dwie substancje wiążące ten sam receptor mogą dawać przeciwne skutki.
Cecha, która odróżnia tę sieć od klasycznej neurotransmisji, to brak magazynu. Dopamina i serotonina czekają w pęcherzykach synaptycznych na sygnał do uwolnienia. Endokannabinoidy powstają dopiero wtedy, gdy komórka ich potrzebuje, z lipidów wbudowanych w błonę, i równie szybko znikają rozłożone enzymatycznie. Sygnał jest więc ograniczony w czasie i w przestrzeni do najbliższego sąsiedztwa miejsca powstania. Wilson i Nicoll pokazali w 2001 roku, że depolaryzowane neurony hipokampa uwalniają anandamid oraz 2-AG w sposób zależny od wapnia (Wilson i Nicoll, Nature, 2001).
Poniższa tabela zbiera rdzeń tej sieci wraz z pracą, która dany element opisała po raz pierwszy. Nie jest to pełna lista białek powiązanych z sygnalizacją lipidową, tylko te pozycje, dla których w dalszej części tekstu cytujemy pracę oryginalną.
| Warstwa | Element | Praca opisująca |
|---|---|---|
| receptor | CB1 | Matsuda, Nature, 1990 |
| receptor | CB2 | Munro, Nature, 1993 |
| ligand | anandamid (AEA) | Devane, Science, 1992 |
| ligand | 2-arachidonoiloglicerol (2-AG) | Mechoulam, 1995 |
| enzym rozkładu | FAAH | Cravatt, Nature, 1996 |
| enzym rozkładu | MAGL | Dinh, PNAS, 2002 |
Jak wyglądała historia odkrycia w latach 1964-2002?
Od izolacji THC do opisania enzymu rozkładającego drugi endokannabinoid minęło niespełna czterdzieści lat. Punkt startowy podaje sam Russo: tetrahydrokannabinol jest głównym przedmiotem badań nad konopiami od 1964 roku, kiedy Raphael Mechoulam go wyizolował i zsyntetyzował (Russo, British Journal of Pharmacology, 2011). Kolejne dwie dekady zajęło znalezienie miejsca, w którym ta cząsteczka działa. Postęp wyszedł najpierw od syntezy silnych pochodnych THC, a dopiero potem od sklonowania genu receptora.
W 1988 roku Devane wraz ze współpracownikami wyznaczył i scharakteryzował miejsce wiązania kannabinoidów w mózgu szczura, używając znakowanego trytem analogu CP-55,940. Stała dysocjacji wyniosła 133 pM, a wiązanie okazało się nasycalne, stereoselektywne i wrażliwe na niehydrolizowalny analog GTP, co wskazywało na regulację przez białko G (Devane, Molecular Pharmacology, 1988). Dwa lata później Matsuda i współpracownicy podali strukturę receptora oraz opisali ekspresję sklonowanego cDNA (Matsuda, Nature, 1990).
Rok 1993 przyniósł drugi receptor. Munro, Thomas i Abu-Shaar sklonowali białko, którego nie ma w mózgu, za to jest w makrofagach strefy brzeżnej śledziony (Munro, Nature, 1993). Ligandy pojawiły się równolegle: anandamid w 1992 roku, a w 1995 monoacyloglicerol obecny w jelicie psa, który wiąże receptory kannabinoidowe (Mechoulam, Biochemical Pharmacology, 1995). Enzymy domknęły obraz: hydrolaza amidów kwasów tłuszczowych w 1996 roku (Cravatt, Nature, 1996) i lipaza monoacyloglicerolowa mózgu w 2002 (Dinh, PNAS, 2002).
Gdzie w mózgu znajdują się receptory CB1?
Receptory CB1 występują w bardzo dużych ilościach w kilku okolicach mózgu, a w mniejszym stężeniu w sposób rozproszony po całym ośrodkowym układzie nerwowym. To one odpowiadają za psychoaktywne działanie kannabinoidów, podczas gdy CB2 ma rozkład znacznie węższy i siedzi głównie na komórkach odpornościowych oraz na nielicznych neuronach (Mackie, Journal of Neuroendocrinology, 2008). Popularne porównanie, według którego gęstość CB1 przewyższa stukrotnie gęstość receptorów opioidowych mu, nie pochodzi z tej pracy i zostało z tekstu usunięte.
Umiejscowienie receptora w synapsie mówi więcej niż sama liczba. Wilson i Nicoll wskazali, że w hipokampie CB1 ulega ekspresji głównie w hamujących interneuronach GABA-ergicznych i skupia się na zakończeniu aksonu, czyli po stronie presynaptycznej. Syntetyczny agonista tego receptora osłabiał uwalnianie kwasu gamma-aminomasłowego w skrawkach hipokampa (Wilson i Nicoll, Nature, 2001). Receptor działa więc jak hamulec nałożony na wyjście neuronu, a nie jak nadajnik własnego sygnału. Galiegue i współpracownicy dodają do tego obrazu stronę obwodową. Poza ośrodkowym układem nerwowym transkrypt CB1 wykryli w nadnerczu, sercu, płucu, prostacie, macicy, jajniku, jądrze, szpiku kostnym, grasicy i migdałkach, choć na poziomie wyraźnie niższym niż w mózgu.
Ta lokalizacja tłumaczy, dlaczego ten sam receptor bywa opisywany raz jako wyciszający pobudzenie, a raz jako je wzmacniający. Jeśli CB1 siedzi na zakończeniu neuronu hamującego, jego pobudzenie zdejmuje hamowanie z komórki docelowej. Jeśli siedzi na zakończeniu pobudzającym, efekt jest odwrotny. Kierunek zależy od tego, którą populację komórek się bada. Więcej o rozmieszczeniu obu receptorów zebraliśmy w osobnym przewodniku o receptorach CB1 i CB2.
Jaką rolę pełnią receptory CB2 w odporności?
Najmocniejszy pomiar rozmieszczenia CB2 pochodzi z pracy Galiegue i współpracowników z 1995 roku. Zespół zmierzył ilościowo transkrypty obu receptorów w ludzkich tkankach i komórkach odpornościowych metodą opartą na PCR. Gen CB2 nie ulega ekspresji w mózgu, natomiast w tkankach odpornościowych jego poziom był 10-100 razy wyższy niż poziom CB1 (Galiegue, European Journal of Biochemistry, 1995). W śledzionie i migdałkach ilość mRNA dla CB2 dorównywała ilości mRNA dla CB1 w ośrodkowym układzie nerwowym. Przewagę ekspresji CB2 w tkankach odpornościowych potwierdzono niezależnie metodą Northern blot.
Ta praca podaje także porządek komórek, a jest on często cytowany błędnie. Kolejność poziomów mRNA dla CB2 wygląda następująco: limfocyty B, potem komórki NK, następnie ze znaczną przerwą monocyty, granulocyty obojętnochłonne, limfocyty T8 i na końcu T4. Wartość 10-100 opisuje przewagę CB2 nad CB1 w tkankach odpornościowych, a nie przewagę limfocytów B nad limfocytami T. Barwienie przeciwciałem potwierdziło obecność białka CB2 w obszarach bogatych w limfocyty B. Taki sam układ wyszedł również w ludzkich liniach komórkowych wywodzących się z linii mieloidalnej, z monocytarnej i z limfoidalnej.
| Twierdzenie krążące w tekstach popularnych | Co podaje praca Galiegue 1995 |
|---|---|
| CB2 jest 10-100 razy liczniejszy w limfocytach B niż w limfocytach T | CB2 jest 10-100 razy liczniejszy niż CB1 w tkankach odpornościowych |
| CB2 nie występuje poza układem odpornościowym | mRNA CB2 wykryto też w innych tkankach obwodowych, ale na bardzo niskim poziomie |
| CB1 to receptor wyłącznie mózgowy | CB1 wykryto także w kilkunastu tkankach obwodowych, choć na poziomie wyraźnie niższym niż w mózgu |
Co dzieje się po pobudzeniu receptora CB2?
Sam rozkład receptora nie mówi jeszcze, jaki jest skutek jego pobudzenia. Odpowiedzi dostarcza przegląd Nagarkatti i współpracowników z 2009 roku, poświęcony kannabinoidom jako nowej klasie leków przeciwzapalnych. Punkt wyjścia jest ten sam co w pomiarze Galiegue: CB1 ulega ekspresji przede wszystkim w mózgu, CB2 głównie na komórkach układu odpornościowego, a obecność obu receptorów na tych komórkach wskazuje na udział kannabinoidów w regulacji odporności (Nagarkatti, Future Medicinal Chemistry, 2009).
Autorzy zbierają trzy mechanizmy opisane w badaniach doświadczalnych. Podanie THC myszom wywoływało nasiloną apoptozę limfocytów T oraz komórek dendrytycznych, czego skutkiem było osłabienie odporności. W kilku modelach kannabinoidy obniżały wytwarzanie cytokin i chemokin, a w części z nich podnosiły liczbę limfocytów T regulatorowych, co tłumi odpowiedź zapalną. Trzeci trop dotyczy samych endokannabinoidów: ich podanie albo zahamowanie enzymów rozkładających prowadziło do osłabienia odporności oraz do cofania się uszkodzenia narządów o podłożu immunologicznym, opisanego między innymi w wątrobie.
Przeciwzapalny profil kannabinoidów opisano zresztą wcześniej niż drugi receptor. Munro i współpracownicy wyliczają w pracy z 1993 roku działania THC niezwiązane z psychoaktywnością: przeciwbólowe, przeciwzapalne, immunosupresyjne, przeciwdrgawkowe, obniżanie ciśnienia wewnątrzgałkowego w jaskrze oraz łagodzenie wymiotów (Munro, Nature, 1993). Znalezienie receptora nieobecnego w mózgu dało tym obserwacjom miejsce, w którym mogą się rozgrywać. Należy przy tym pamiętać, że wymienione dane pochodzą w większości z modeli zwierzęcych i z hodowli komórkowych, a nie z badań u ludzi.
Czy istnieje trzeci receptor kannabinoidowy?
Pytanie o receptor CB3 wraca w tekstach o GPR55 i TRPV1 regularnie, a odpowiedź środowiska farmakologicznego jest od 2010 roku niezmienna. Przegląd Międzynarodowej Unii Farmakologii Podstawowej i Klinicznej wylicza kryteria, które musiałby spełnić każdy nowy receptor kannabinoidowy, i stwierdza wprost, że dziś nie spełnia ich żaden receptor ani kanał spoza pary CB1 oraz CB2 (Pertwee, Pharmacological Reviews, 2010).
To nie znaczy, że kandydatów nie ma. Ten sam przegląd wskazuje cele warte dalszych badań, w tym receptor waniloidowy TRPV1, który być może działa jako jonotropowy receptor kannabinoidowy w warunkach fizjologicznych albo patologicznych, oraz część receptorów sierocych sprzężonych z białkiem G. Autorzy omawiają także zdolność CB1 do tworzenia kompleksów heteromerycznych z innymi receptorami tej rodziny i istnienie kilku niescharakteryzowanych dotąd receptorów kannabinoidowych. Zakres samego przeglądu jest zresztą znacznie szerszy, niż sugeruje jego tytuł. Zbiera on dane o oddziaływaniach ortosterycznych oraz allosterycznych ligandów kannabinoidowych z uznanymi receptorami spoza pary CB1 i CB2, z receptorami odsieroconymi, z kanałami jonowymi bramkowanymi ligandem, z kanałami z rodziny przejściowego potencjału receptorowego, a także z jądrowymi receptorami aktywowanymi przez proliferatory peroksysomów. Osobny rozdział poświęcono aktualnemu nazewnictwu.
Praktyczny wniosek dla czytelnika jest taki: nazwa CB3 w materiałach marketingowych to skrót myślowy, nie ustalona jednostka farmakologiczna. Ligandy, które podobnie oddziałują z CB1 albo CB2, mogą mieć wyraźnie różny profil farmakologiczny właśnie dlatego, że dodatkowo trafiają w inne białka.
Czym różni się anandamid od 2-AG?
Dwa główne endokannabinoidy różnią się nie tylko budową, ale też siłą, z jaką pobudzają receptor. Sugiura zebrał to w przeglądzie z 2006 roku: anandamid zachowuje się wobec receptorów kannabinoidowych zwykle jak agonista częściowy, natomiast 2-AG w większości układów pobudza je w pełni (Sugiura, Progress in Lipid Research, 2006). Badania zależności między budową a aktywnością doprowadziły autorów do wniosku, że to raczej 2-AG, a nie anandamid, jest naturalnym ligandem obu receptorów. Różnica dotyczy też samej ilości: w mózgu 2-AG jest obecny w stężeniu 170 razy wyższym niż anandamid, co zmierzyli Stella i współpracownicy (Nature, 1997). W obiegu liczba ta krąży zaokrąglona do 200 i przypisywana przeglądowi Sugiury, który jej nie podaje.
Powstawanie 2-AG jest szybkie i zależy od przemiany fosfolipidów zawierających kwas arachidonowy, przede wszystkim od nasilonego obrotu fosfolipidów inozytolowych po pobudzeniu komórki. Ta sama praca przypisuje 2-AG rolę przekaźnika wstecznego w regulacji przewodzenia synaptycznego oraz udział w reakcjach zapalnych i odpowiedzi odpornościowej. Anandamid wyizolowano wcześniej, w 1992 roku, jako składnik mózgu wiążący receptor kannabinoidowy (Devane, Science, 1992). Sam Sugiura zaznacza przy tym, że 2-AG opisano w 1995 roku niezależnie w dwóch materiałach: w mózgu szczura oraz w jelicie psa. Ta druga lokalizacja bywa pomijana, a tłumaczy, dlaczego układ ten omawia się dziś nie tylko w neurologii.
Popularne liczby opisujące stężenia obu cząsteczek, na przykład dwustukrotna przewaga 2-AG nad anandamidem albo zakres 30-50 pmol na gram tkanki, nie występują w streszczeniu tej pracy i zostały z artykułu usunięte. Zostawiliśmy to, co źródło stwierdza wprost: różnicę w typie agonizmu. Osobne omówienia obu cząsteczek zebraliśmy w przewodnikach o 2-AG oraz o anandamidzie.
Jak enzymy FAAH i MAGL wyłączają sygnał?
Sygnał endokannabinoidowy kończy się rozkładem enzymatycznym i to enzymy, a nie receptory, decydują o czasie jego trwania. Cravatt i współpracownicy scharakteryzowali w 1996 roku enzym rozkładający neuromodulacyjne amidy kwasów tłuszczowych, czyli hydrolazę FAAH (Cravatt, Nature, 1996). Sześć lat później Dinh i współpracownicy sklonowali z biblioteki cDNA mózgu szczura lipazę monoacyloglicerolową i wykazali, że hydroliza przez ten enzym jest podstawowym mechanizmem unieczynniania 2-AG w nienaruszonych neuronach (Dinh, PNAS, 2002).
Skalę tego podziału pracy zmierzył Blankman. Podejście proteomiki funkcjonalnej pozwoliło zmapować enzymy rozkładające 2-AG w mózgu myszy: około 85% aktywności przypada na MAGL, a pozostałe 15% głównie na dwa wcześniej nieopisane białka, ABHD6 oraz ABHD12 (Blankman, Chemistry and Biology, 2007). Wszystkie trzy enzymy mają odmienne rozmieszczenie wewnątrz komórki, co sugeruje, że kontrolują różne pule tej samej cząsteczki.
Rozmieszczenie mRNA lipazy monoacyloglicerolowej w mózgu szczura okazało się nierównomierne, z najwyższymi poziomami tam, gdzie obecny jest także receptor CB1: w hipokampie, korze, przednim wzgórzu i móżdżku. Badania immunohistochemiczne w hipokampie wykazały wyraźną warstwowość rozmieszczenia enzymu, co wskazuje na jego położenie po stronie presynaptycznej. Enzym stoi więc dokładnie tam, gdzie kończy bieg cząsteczka, którą rozkłada. Dinh i współpracownicy pokazali też skutek czynnościowy: wprowadzenie do neuronów kory szczura dodatkowych kopii genu tego enzymu za pomocą adenowirusa podniosło jego ekspresję i osłabiło gromadzenie się 2-AG po pobudzeniu komórek. Na gromadzenie się anandamidu ta sama zmiana nie miała wpływu, co potwierdza podział pracy między oba enzymy.
Na czym polega sygnalizacja wsteczna w synapsie?
W klasycznym opisie synapsy informacja biegnie w jedną stronę: neuron presynaptyczny uwalnia przekaźnik, neuron postsynaptyczny go odbiera. Wilson i Nicoll wykazali w 2001 roku, że przejściowe osłabienie przewodzenia GABA-ergicznego, które następuje po depolaryzacji komórki piramidowej hipokampa, jest przenoszone sygnałem biegnącym w drugą stronę, przez uwolnienie endogennych kannabinoidów (Wilson i Nicoll, Nature, 2001). Neuron dostał tym samym mechanizm porozumiewania się wstecz przez synapsę i modulowania własnych wejść.
Kolejność zdarzeń wygląda następująco. Depolaryzacja otwiera kanały wapniowe zależne od potencjału, wzrost stężenia wapnia wewnątrz komórki uruchamia wytwarzanie endokannabinoidów z lipidów błonowych, a gotowa cząsteczka przechodzi przez szczelinę w kierunku zakończenia presynaptycznego. Tam wiąże CB1 i osłabia uwalnianie przekaźnika. Sugiura wskazuje 2-AG jako przekaźnik pełniący tę rolę (Sugiura, Progress in Lipid Research, 2006).
Znaczenie tego mechanizmu wykracza poza samą ciekawostkę fizjologiczną. Skoro komórka odbierająca sygnał potrafi zmniejszyć jego natężenie u źródła, dysponuje lokalną pętlą sprzężenia zwrotnego działającą w skali pojedynczej synapsy, bez udziału jakiegokolwiek ośrodka nadrzędnego. To tłumaczy, dlaczego substancje pobudzające CB1 wpływają na pamięć krótkotrwałą i na poczucie upływu czasu, czyli na funkcje zależne od precyzyjnego rytmu sieci hipokampa. Zwróć uwagę na kolejność odkryć. Najpierw wiadomo było, że depolaryzowane neurony hipokampa uwalniają oba endokannabinoidy w sposób zależny od wapnia i że syntetyczny agonista CB1 osłabia uwalnianie kwasu gamma-aminomasłowego. Dopiero praca z 2001 roku połączyła te fakty w jeden mechanizm.
Czym jest teoria klinicznego niedoboru endokannabinoidów?
Hipotezę tę sformułował Ethan Russo, a jej przegląd po latach ukazał się w 2016 roku (Russo, Cannabis and Cannabinoid Research, 2016). Punktem wyjścia jest założenie, że każdy człowiek ma pewien podstawowy poziom aktywności endokannabinoidowej, wynikający ze stężeń anandamidu i 2-AG, tempa ich wytwarzania oraz rozkładu, a także z liczby i stanu receptorów. Teoria mówi, że w pewnych stanach, wrodzonych albo nabytych, poziom ten spada i sam staje się przyczyną objawów.
Russo wskazuje trzy zespoły: migrenę, fibromialgię oraz zespół jelita drażliwego. Łączy je brak wyraźnych zmian uchwytnych w rutynowej diagnostyce, oporność na kolejne leki, nakładające się populacje chorych i wspólny wzorzec nadwrażliwości bólowej z cechami ośrodkowej sensytyzacji. Autor przypomina, że przez lata pacjenci z tymi rozpoznaniami byli obciążani etykietą psychosomatyczną.
Ważne jest, co zmieniło się między pierwszym sformułowaniem hipotezy a przeglądem z 2016 roku. Sam Russo pisze, że gdy stawiał ją po raz pierwszy w 2001 roku i później, opierała się na nakładaniu genetycznym oraz na współchorobowości, a także na obserwacji, że leczenie kannabinoidami często przynosiło ulgę, natomiast brakowało dowodu obiektywnego i danych z formalnych badań klinicznych. Dziś udokumentowano istotne statystycznie różnice w stężeniu anandamidu w płynie mózgowo-rdzeniowym u osób z migreną, a badania obrazowe wykazały obniżoną czynność tego układu w zespole stresu pourazowego. To wsparcie hipotezy, nie jej potwierdzenie.
Czy CBD naprawdę działa przez układ endokannabinoidowy?
To pytanie ma dwie poprawne odpowiedzi, które trzeba postawić obok siebie, bo pojedynczo obie wprowadzają w błąd. Laprairie i współpracownicy wykazali w 2015 roku, że kannabidiol obniża skuteczność oraz siłę działania 2-AG i THC na szlaki zależne od CB1 w komórkach linii HEK 293A i w modelu komórkowym neuronów prążkowia. Zmniejszał również wiązanie arrestyny 2 do receptora, przez co zapobiegał jego wchłanianiu do wnętrza komórki. Autorzy nazywają to niekompetycyjną ujemną modulacją allosteryczną (Laprairie, British Journal of Pharmacology, 2015).
Druga odpowiedź pochodzi z przeglądu Ibeas Bih i współpracowników z tego samego roku. Autorzy przejrzeli literaturę opisującą farmakologię molekularną kannabidiolu i naliczyli ponad 65 odrębnych celów molekularnych. Ich wniosek brzmi jednak inaczej, niż sugeruje ta liczba: obecne dowody wskazują, że kannabidiol nie oddziałuje bezpośrednio z układem endokannabinoidowym poza warunkami hodowli komórkowej i stężeniami ponadfizjologicznymi (Ibeas Bih, Neurotherapeutics, 2015). W chorobach neurologicznych działanie przez ten układ uznali za bardzo mało prawdopodobne.
Sprzeczności między tymi pracami nie ma. Laprairie opisuje zachowanie cząsteczki w hodowli, Ibeas Bih ocenia, czy to zachowanie da się przenieść na organizm przy stężeniach osiągalnych po podaniu doustnym, które przy słabym wchłanianiu kannabidiolu są niskie. Zdania w rodzaju „CBD podnosi poziom endogennych endokannabinoidów przez hamowanie FAAH” nie mają w tych źródłach oparcia i z tekstu zniknęły. Po odrzuceniu celów mało prawdopodobnych autorzy przeglądu zostawili te powiązane z regulacją stężenia wapnia wewnątrz komórki, w tym kanał VDAC1, receptor GPR55 i kanały wapniowe typu T.
Co naprawdę mówi praca o efekcie otoczenia?
Efekt otoczenia jest w materiałach handlowych podawany jako fakt uzasadniający wybór ekstraktu pełnospektralnego zamiast izolatu. Praca, do której odsyła się najczęściej, mówi coś ostrożniejszego. Russo omawia w niej terpenoidy konopne, ich wspólny z fitokannabinoidami prekursor oraz status substancji powszechnie uznanych za bezpieczne, a następnie wskazuje interakcje, które mogłyby dać synergię w bólu, zapaleniu, depresji, lęku, uzależnieniu, padaczce i nowotworach (Russo, British Journal of Pharmacology, 2011).
Zdanie rozstrzygające stoi na końcu streszczenia i brzmi warunkowo: synergia fitokannabinoidów z terpenoidami, jeśli zostanie udowodniona, zwiększa prawdopodobieństwo, że z tej rośliny da się wyprowadzić szeroką linię nowych produktów terapeutycznych. Autor proponuje w tej samej pracy metody badania efektu otoczenia w przyszłych doświadczeniach, co samo w sobie mówi, że kwestia była wtedy otwarta. Praca jest przeglądem jednego autora, a nie badaniem porównującym ekstrakt z izolatem.
Jedna interakcja została w tej rodzinie zmierzona wprost. Gertsch i współpracownicy wykazali, że beta-kariofilen, lotny składnik olejków eterycznych wielu roślin przyprawowych i spożywczych, wybiórczo wiąże receptor CB2 ze stałą powinowactwa 155 nM i działa jako jego czynnościowy agonista (Gertsch, PNAS, 2008). U myszy pozbawionych CB2 przeciwzapalne działanie tego terpenu zanikało, co wskazuje na receptor jako miejsce działania. W samych konopiach należy on do składników głównych. Po związaniu z CB2 hamował cyklazę adenylanową, wywoływał przemijające zmiany stężenia wapnia wewnątrz komórki i osłabiał wywołane lipopolisacharydem wytwarzanie cytokin prozapalnych we krwi obwodowej. To jedyna pozycja z całej rodziny terpenów, dla której miejsce działania zmierzono wprost.
Jak polskie prawo definiuje próg THC?
Fitokannabinoidy podlegają w Polsce regulacji, która wprost odwołuje się do zawartości dwóch substancji, nie jednej. Konopie włókniste to rośliny z gatunku Cannabis sativa L., w których suma zawartości delta-9-THC oraz kwasu tetrahydrokannabinolowego, oznaczanego skrótem THCA, w kwiatowych lub owocujących wierzchołkach roślin, z których nie usunięto żywicy, nie przekracza 0,3% w przeliczeniu na suchą masę. Suma podlega zaokrągleniu do jednego miejsca po przecinku.
Podstawą jest art. 4 pkt 5 ustawy z 29 lipca 2005 r. o przeciwdziałaniu narkomanii (t.j. Dz.U. 2023 poz. 1939), w brzmieniu nadanym ustawą z 24 marca 2022 r. (Dz.U. 2022 poz. 763), obowiązującym od 7 maja 2022 roku. Nowelizacja z 27 sierpnia 2026 roku tego przepisu nie zmieniła.
Dwie rzeczy warto rozdzielić. Po pierwsze, próg liczy się jako suma delta-9-THC i THCA, a nie jako sam delta-9-THC, co zmienia wynik badania laboratoryjnego tej samej próbki. Po drugie, próg krajowy odpowiada progowi unijnemu co do wartości, ale z niego nie wynika. Odmiany konopi kwalifikujące się do wsparcia w ramach Wspólnej Polityki Rolnej mogą od 1 stycznia 2023 roku zawierać do 0,3% THC na podstawie art. 4 ust. 4 rozporządzenia (UE) 2021/2115, wcześniej próg unijny wynosił 0,2%. To dwie odrębne regulacje o tej samej liczbie. Ani ustawa nowelizująca, ani jej odpowiednik z tej samej daty nie powołują rozporządzenia unijnego jako swojej podstawy. Poprawne sformułowanie brzmi więc: próg krajowy odpowiada progowi unijnemu. Zdanie, w którym polski próg wynika z rozporządzenia unijnego, jest błędne mimo zgodności obu liczb.
Czy aktywność fizyczna zmienia poziom endokannabinoidów?
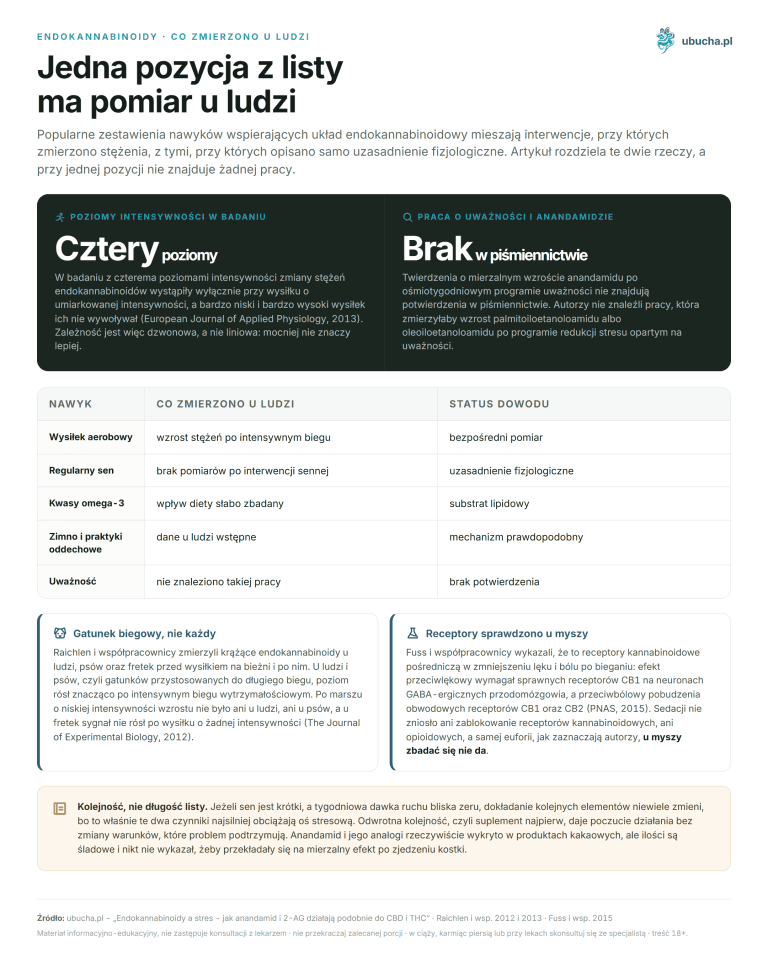
Tak, i jest to jedna z nielicznych obserwacji z tego obszaru wykonanych u ludzi. Sparling i współpracownicy badali wytrenowanych studentów biegnących na bieżni albo jadących na rowerze stacjonarnym przez 50 minut przy 70-80% tętna maksymalnego. Praca podaje pierwszy dowód, że wysiłek o umiarkowanej intensywności pobudza układ endokannabinoidowy, i wskazuje go jako możliwy mechanizm analgezji powysiłkowej oraz innych przystosowań do treningu (Sparling, Neuroreport, 2003).
Trzy liczby, które krążą przy tym badaniu, w streszczeniu nie występują: dwukrotny wzrost stężenia anandamidu we krwi, przedział 60-70% tętna maksymalnego jako optymalny oraz osłabienie efektu powyżej 80% tętna maksymalnego. Zakres faktycznie użyty w tej pracy to 70-80% tętna maksymalnego i tylko taką wartość wolno przy niej podawać. Pamiętaj też o doborze grupy. Badano wytrenowanych studentów, a nie osoby nieaktywne, więc przeniesienie wyniku na czytelnika zaczynającego treningi jest założeniem, którego ta praca nie potwierdza.
Drugi trop dotyczy genetyki. Dincheva i współpracownicy stworzyli mysz z wprowadzoną odmianą genu FAAH odpowiadającą częstemu wariantowi ludzkiemu C385A, oznaczanemu jako rs324420. Wariant ten zmienia ekspresję oraz aktywność enzymu, przez co podnosi stężenie anandamidu. Nosiciele wariantu, zarówno myszy, jak i ludzie, mieli obniżoną ekspresję FAAH, silniejsze połączenie czynnościowe między korą czołową a ciałem migdałowatym, sprawniejsze wygaszanie reakcji lękowej i mniej zachowań lękowych (Dincheva, Nature Communications, 2015). Praca ukazała się w Nature Communications, nie w PNAS, jak podawała poprzednia wersja tego artykułu.
Który organizm ma układ endokannabinoidowy?
Odpowiedź jest mniej równa, niż sugerują popularne streszczenia. McPartland i współpracownicy przeszukali genomy dwunastu odległych ewolucyjnie organizmów, od człowieka i myszy, przez rozdymkę japońską, żachwę, nicienia oraz muszkę owocową, po drożdże, rzodkiewnik, zarodźca malarii, orzęska i dwa mikroorganizmy. Ortologi wyszukiwano metodami filogenetycznymi, a ich zdolność do pełnienia funkcji przewidywano na podstawie motywów aminokwasowych o znanym udziale w działaniu tych białek (McPartland, Gene, 2006).
Wynik pokazał, że poszczególne geny mają odmienne drogi ewolucyjne. Ortologi receptorów TRPV1 i GPR55 ograniczają się do ssaków. Receptor CB2 oraz DAGL beta pojawiają się u kręgowców. MAGL wraz z COX2 sięgają strunowców, DAGL alfa oraz receptory podobne do CB1 u zwierząt, NAPE-PLD u zwierząt i grzybów, a FAAH sięga aż do wszystkich eukariontów. Nie ma więc jednej daty, od której cały ten układ istnieje.
Autorzy zaznaczają przy tym, że ich metoda wykrywała mniej ortologów niż automatyczne systemy adnotacji, więc wynik jest raczej ostrożny niż zawyżony. Nowością tej pracy było nałożenie informacji o funkcji białka na drzewa genów, co pozwoliło ocenić nie tylko podobieństwo sekwencji, lecz także szansę, że dany ortolog naprawdę pełni tę samą rolę. W dyskusji autorzy omawiają profile filogenetyczne, zastępowanie genów nieortologicznych, zbieżność czynnościową oraz koewolucję. Zdanie o tym, że geny obu receptorów są zachowane od ponad 600 milionów lat, w tej pracy nie występuje i zostało usunięte. Szersze porównanie związków wytwarzanych przez organizm i przez roślinę zebraliśmy w tekście o fitokannabinoidach i endokannabinoidach.
Najczęściej zadawane pytania
Czym jest układ endokannabinoidowy?
To lipidowa sieć sygnalizacyjna złożona z endokannabinoidów, receptorów kannabinoidowych oraz enzymów, które te ligandy wytwarzają i rozkładają. Wiele efektów kannabinoidów przechodzi przez dwa receptory sprzężone z białkiem G, CB1 oraz CB2, choć w grę mogą wchodzić także inne białka (Mackie, Journal of Neuroendocrinology, 2008).
Gdzie znajdują się receptory CB1 i CB2?
CB1 występuje w bardzo dużych ilościach w kilku okolicach mózgu i w mniejszym stężeniu rozproszony poza nimi. CB2 ma rozkład węższy i siedzi głównie na komórkach odpornościowych. Gen CB2 nie ulega ekspresji w mózgu, a w tkankach odpornościowych jego poziom jest 10-100 razy wyższy niż poziom CB1 (Galiegue, European Journal of Biochemistry, 1995).
Czym różni się anandamid od 2-AG?
Anandamid działa wobec receptorów kannabinoidowych zwykle jak agonista częściowy, natomiast 2-AG pobudza je w większości układów w pełni. Badania zależności między budową a aktywnością doprowadziły autorów przeglądu do wniosku, że to raczej 2-AG jest naturalnym ligandem obu receptorów (Sugiura, Progress in Lipid Research, 2006).
Jak działają enzymy FAAH i MAGL?
FAAH rozkłada neuromodulacyjne amidy kwasów tłuszczowych, w tym anandamid (Cravatt, Nature, 1996). MAGL unieczynnia 2-AG i odpowiada za około 85% aktywności rozkładającej tę cząsteczkę w mózgu myszy, a pozostałe 15% przypada głównie na białka ABHD6 oraz ABHD12 (Blankman, Chemistry and Biology, 2007).
Czym jest teoria klinicznego niedoboru endokannabinoidów?
To hipoteza Ethana Russa, według której obniżony podstawowy poziom aktywności tego układu sam wywołuje objawy migreny, fibromialgii i zespołu jelita drażliwego. Wspierają ją udokumentowane różnice stężenia anandamidu w płynie mózgowo-rdzeniowym u osób z migreną (Russo, Cannabis and Cannabinoid Research, 2016).
Czy CBD działa przez układ endokannabinoidowy?
W hodowlach komórkowych kannabidiol zachowuje się wobec CB1 jak niekompetycyjny ujemny modulator allosteryczny (Laprairie, British Journal of Pharmacology, 2015). Przegląd Ibeas Bih z tego samego roku uznaje jednak bezpośrednie oddziaływanie z tym układem poza stężeniami ponadfizjologicznymi w hodowli za mało prawdopodobne (Neurotherapeutics, 2015).
Na czym polega sygnalizacja wsteczna?
Sygnał biegnie odwrotnie niż w klasycznej synapsie, czyli od komórki odbierającej do zakończenia, które przekaźnik uwalnia. Przejściowe osłabienie przewodzenia GABA-ergicznego po depolaryzacji komórki piramidowej hipokampa przenoszą właśnie uwolnione endokannabinoidy (Wilson i Nicoll, Nature, 2001). Neuron zyskuje dzięki temu możliwość modulowania własnych wejść synaptycznych.
Czy zwierzęta mają układ endokannabinoidowy?
Poszczególne geny mają odmienne drogi ewolucyjne. Receptory podobne do CB1 i DAGL alfa występują u zwierząt, CB2 oraz DAGL beta u kręgowców, MAGL u strunowców, a FAAH aż u eukariontów. Ortologi TRPV1 i GPR55 ograniczają się do ssaków (McPartland, Gene, 2006).
Które twierdzenia o tym układzie nie mają oparcia w źródłach?
Przy porządkowaniu tego artykułu sześć identyfikatorów prowadziło do prac z zupełnie innych dziedzin, między innymi do pracy o punkcie złamania chromosomu w guzie limfocytów T oraz do badania nad receptorem insulinopodobnego czynnika wzrostu. Kilkanaście liczb nie występowało w pracach, którym je przypisano. Poniższa tabela zestawia najczęściej powtarzane zdania z tym, co podaje wskazane źródło.
| Powtarzane twierdzenie | Co podaje wskazane źródło |
|---|---|
| Stężenie 2-AG w mózgu jest około 200 razy wyższe niż anandamidu | Liczba jest bliska prawdy, ale przypisana nie tej pracy: podają ją Stella i wsp. (Nature, 1997) i wynosi 170 razy, nie 200. Przegląd Sugiury z 2006 roku opisuje różnicę typu agonizmu |
| Gęstość CB1 przewyższa stukrotnie gęstość receptorów opioidowych mu | Mackie 2008 pisze o bardzo dużych ilościach CB1 w kilku okolicach mózgu, bez porównania z układem opioidowym |
| Geny CB1 i CB2 są zachowane od ponad 600 milionów lat | McPartland 2006 podaje odmienne drogi ewolucyjne poszczególnych genów, bez jednej daty |
| Bieg podnosi anandamid dwukrotnie, a optimum to 60-70% tętna maksymalnego | Sparling 2003 opisuje wysiłek przy 70-80% tętna maksymalnego i nie podaje krotności |
| Wariant FAAH C385A obniża aktywność enzymu o 50% u 20% Europejczyków | Dincheva 2015 podaje obniżoną ekspresję enzymu i wyższy anandamid, bez tych odsetków |
| Ekstrakt pełnospektralny działa silniej niż izolat, bo udowodniono efekt otoczenia | Russo 2011 stawia synergię warunkowo i dopiero proponuje metody jej zbadania |
| CBD podnosi poziom endokannabinoidów przez hamowanie FAAH | Ibeas Bih 2015 uznaje bezpośrednie działanie CBD przez ten układ za mało prawdopodobne |
Wspólny mianownik tych pozycji jest jeden. Identyfikator prowadził do pracy istniejącej i zwykle na temat, więc sprawdzenie na poziomie samego adresu wypadało poprawnie. Rozjazd widać dopiero przy zestawieniu zdania z treścią streszczenia, a to wymaga otwarcia pracy. Dlatego przy każdej liczbie w tym artykule podajemy nazwisko pierwszego autora, czasopismo i rok, a odnośnik prowadzi do rekordu pracy, nie do strony głównej wydawnictwa. Czytelnik może sprawdzić każdą z nich w kilkanaście sekund.
Podsumowanie
Zebrane tu prace układają się w obraz spójny, ale węższy niż ten, który krąży w tekstach popularnych. Pewne jest istnienie dwóch receptorów o rozdzielonym rozmieszczeniu, dwóch endogennych ligandów różniących się typem agonizmu, dwóch enzymów rozkładających oraz mechanizmu przekazywania sygnału wstecz przez synapsę. Każdy z tych elementów ma pracę oryginalną, która go opisała, i każdy da się sprawdzić pod podanym identyfikatorem.
Znacznie mniej pewne jest wszystko, co dotyczy sterowania tym układem od zewnątrz. Teoria niedoboru endokannabinoidów pozostaje hipotezą ze wsparciem, ale bez rozstrzygnięcia. Synergia fitokannabinoidów z terpenoidami jest u Russa postawiona warunkowo. Bezpośrednie działanie kannabidiolu przez ten układ przegląd z 2015 roku uznaje za mało prawdopodobne przy stężeniach osiągalnych w organizmie. Te trzy zdania warto trzymać obok siebie, bo w materiałach handlowych zwykle stoją bez zastrzeżeń. Sygnał ostrzegawczy widać zresztą już w pracy z 1988 roku: w teście wiązania kannabidiol oraz kannabigerol wypierały znakowany ligand z receptora w mniej niż połowie przy stężeniu 1 mikromola, podczas gdy THC i jego pochodna hydroksylowa robiły to skutecznie (Devane, Molecular Pharmacology, 1988). Słabe powinowactwo kannabidiolu do tego receptora nie jest więc odkryciem ostatnich lat.
Z redakcji tego artykułu usunęliśmy sześć błędnych identyfikatorów, które prowadziły do prac z innych dziedzin, oraz każdą liczbę, której nie ma w cytowanym źródle. Jeśli szukasz produktów zawierających fitokannabinoidy, ich zestawienie znajdziesz w kategorii olejki.
Artykuł ma charakter informacyjno-edukacyjny i nie stanowi porady medycznej. Przed rozpoczęciem stosowania konopi lub CBD w celach terapeutycznych skonsultuj się z lekarzem, zwłaszcza jeśli przyjmujesz inne leki, jesteś w ciąży lub karmisz piersią.
Autor: Michał Waluk · Opublikowano: 2026-05-11 · Aktualizacja: 2026-08-10